导读:做LC-MS/MS定量的人,大多只关注"标什么化合物"——胆酸配胆酸-d4,照着文献买就行。但很少有人问三个更关键的问题:标记在分子的哪个位置?标几个氘才够分峰?氘代和¹³C除了价格还有什么隐藏差异?本文从"标在哪→标多少→标哪种"三个维度递进展开,拆解胆汁酸和酰基肉碱同位素内标的选型逻辑。
做LC-MS/MS定量的人大概都遇到过这个场景:方法建好了,标准曲线线性不错,质控样品也在控。但跑实际样本时,内标峰面积和目标物峰面积的比值在不同浓度点漂移——你怀疑是基质效应,加了好几个质控点,问题依旧。最后发现:你的MRM离子对根本没在追踪内标信号——内标的同位素标记在CID碎裂时丢了,产物离子质量数和未标记物完全一样,四级杆区分不了内标和目标物。
这不是仪器问题,是内标选错了。不是选错了化合物,是选错了标记位点。
胆汁酸和酰基肉碱是LC-MS/MS临床检测中最高频的两类靶向代谢物。胆汁酸定量用于肝胆疾病诊断和药物代谢研究,酰基肉碱谱是新生儿遗传代谢病筛查的核心指标——中国2018年室间质评覆盖C0-C18共15种酰基肉碱,150家实验室参与[1]。这两类化合物的同位素内标,官网有217个同位素SKU,是最大的产品库。
但选内标时,大多数人只关注"标什么化合物"——胆酸配胆酸-d4,甘氨胆酸配甘氨胆酸-d4,照着文献或试剂盒推荐买。很少有人问三个更关键的问题:
标在哪? 同一个胆酸,标记在类固醇骨架C-2,4位和标记在甘氨酸侧链上,CID碎裂后标记的去向完全不同——前者留在产物离子中,MRM追踪有效;后者可能随中性丢失跑了,产物离子质量数没变,MRM过渡失去内标追踪意义。
标多少? 酰基肉碱有d3和d9两种版本,标记3个氘和9个氘不是简单的"多标几个"——d3离子响应更强,d9质量偏移更大、低浓度信噪比更高,但标记太少(如d2),内标和目标物的质谱峰可能无法完全分峰。
标哪种? 氘代标记便宜、品类多,但C-D键比C-H键更短更稳,疏水性微降,反相色谱上内标保留时间可能比目标物提前几秒。在基质效应严重的复杂样本中,这点漂移可能导致内标和目标物不再完全共流出,校正精度下降。¹³C标记无此问题,但价格显著更高。
本文从"标在哪(位点)→标多少(数量)→标哪种(氘代vs ¹³C)"三个维度递进展开,拆解胆汁酸和酰基肉碱同位素内标的选型逻辑。本文与本站已发布的《稳定同位素标记脂肪酸选型指南》形成互补——那篇讲"标什么化合物",这篇讲"怎么标"。
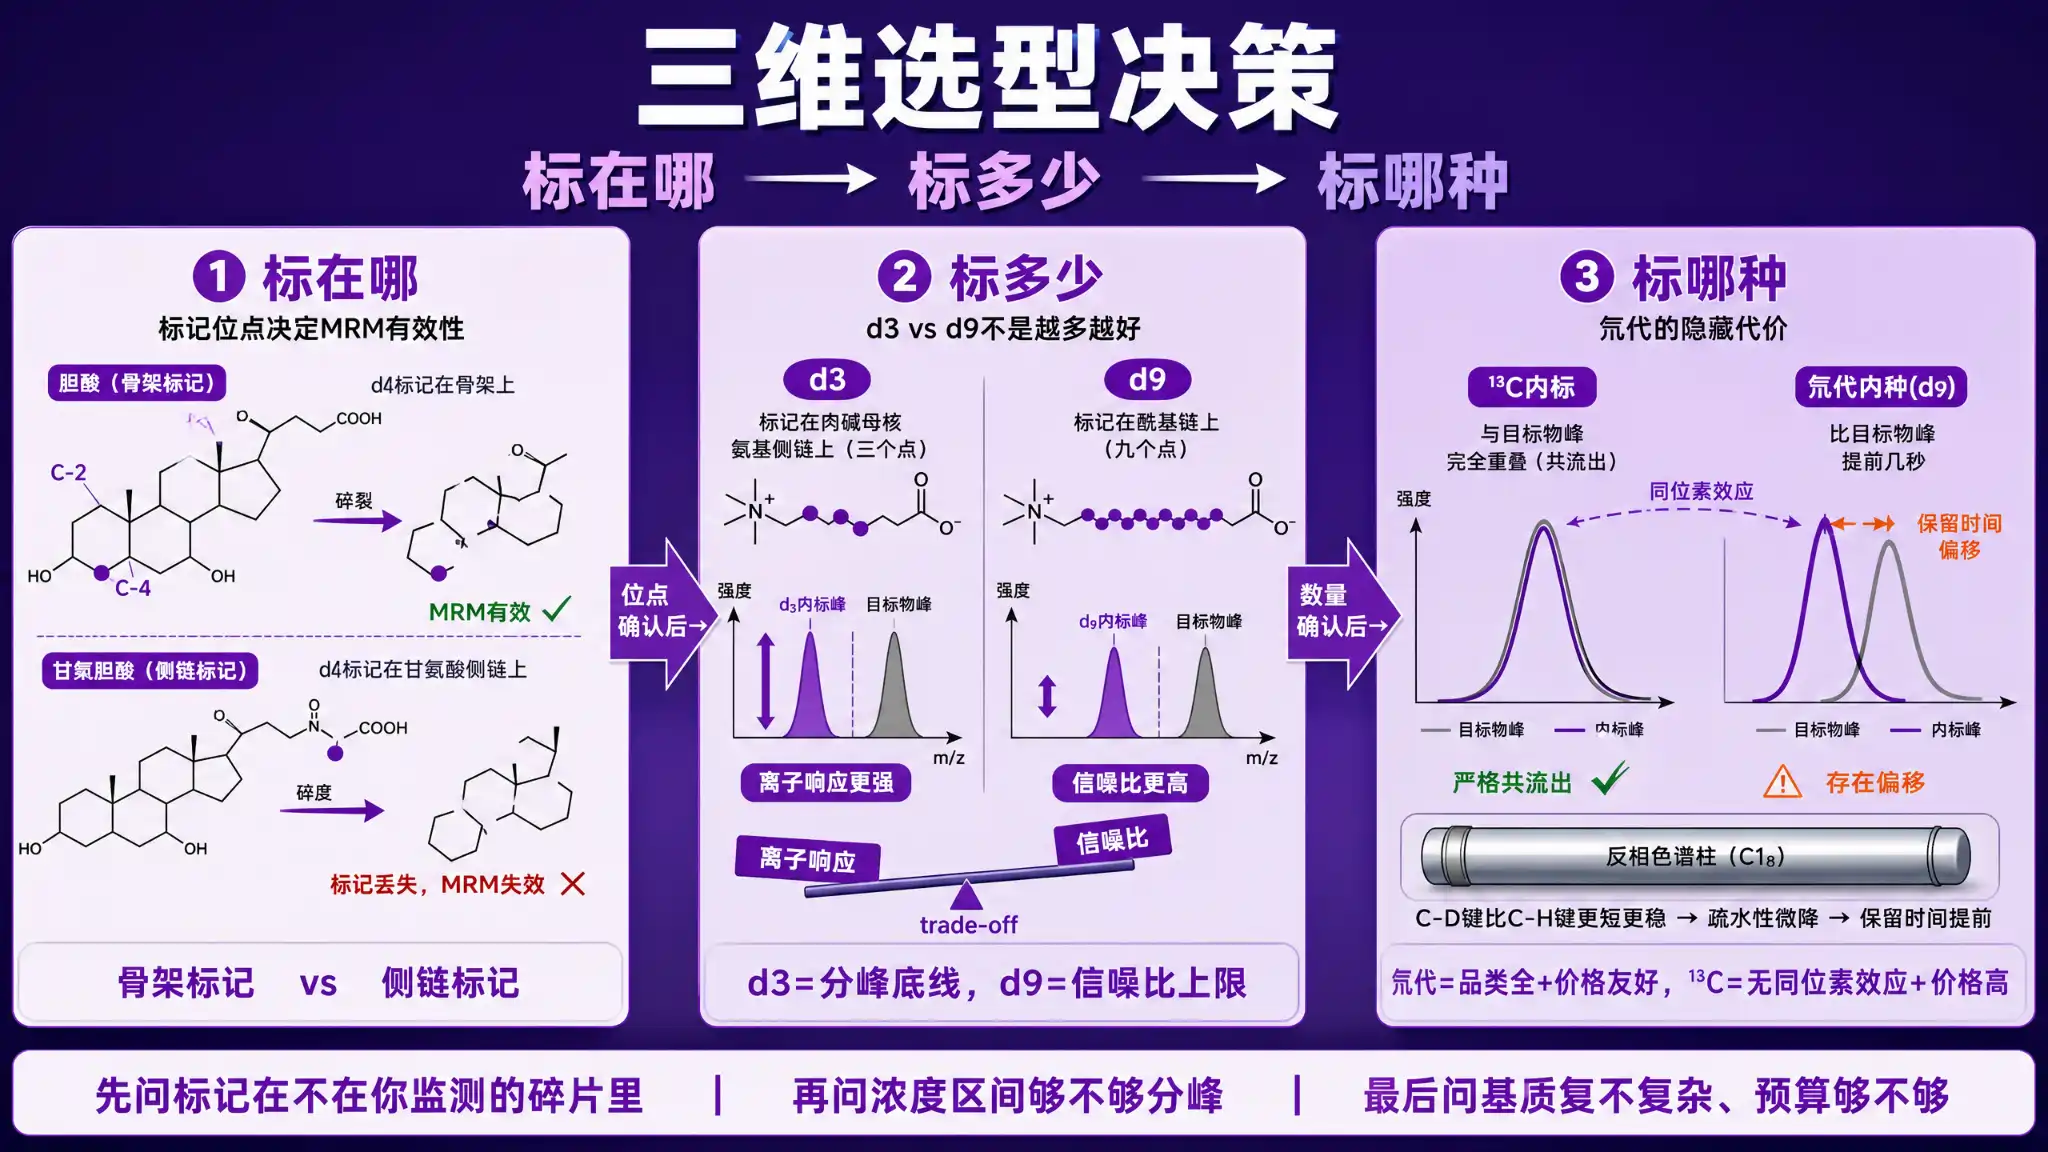
图1 | 同位素内标三维选型决策全景:标在哪→标多少→标哪种
MRM(多反应监测)的工作原理是:选一个母离子(Q1),碎裂后选一个特征产物离子(Q3),用这对离子对来特异性追踪目标物。内标的作用是和目标物一起经历样品前处理、色谱分离、离子化全过程,通过分析物/内标峰面积比来校正变异。
这里有一个隐含前提:内标和目标物在质谱上的行为必须可追踪。具体说,内标的同位素标记必须出现在你监测的那个产物离子里——如果标记在碎裂时丢失的碎片上,MRM离子对就追踪不到内标信号。
大多数人的选型逻辑是:文献用胆酸-d4,我也买胆酸-d4;试剂盒配了什么内标,就用什么。这个逻辑隐含一个假设——同位素标记只要质量数对了,MRM就能追踪。但这个假设不一定成立。标记在分子的哪个位置,决定了碎裂后标记跟哪个碎片走。同一个化合物,标记在骨架上和标记在侧链上,MRM追踪的有效性可能完全不同。
这不是理论推演,是实际会发生的问题。关键在于:标记位点决定了CID(碰撞诱导解离)碎裂后标记留在哪个碎片上。
胆汁酸分两大类——游离胆汁酸(如胆酸、鹅去氧胆酸、石胆酸)和结合胆汁酸(如甘氨胆酸、牛磺胆酸)。两者的CID碎裂路径不同[2]:
游离胆汁酸(如胆酸):碎裂主要发生在类固醇骨架上,产生脱水碎片([M+H-H₂O]⁺)和骨架断裂碎片。标记在骨架上的内标,碎裂后标记自然留在产物离子中。
结合胆汁酸(如甘氨胆酸):CID碎裂时优先在甘氨酸/牛磺酸侧链与骨架之间的酰胺键断裂,产生三类碎片:
• 甘氨酸相关碎片(如m/z 76)
• 牛磺酸相关碎片(如m/z 124)
• 类固醇骨架碎片(脱水形式)
这意味着——如果你的内标标记在类固醇骨架上(如胆酸-2,2,4,4-d4,标记在骨架C-2和C-4位),碎裂后标记留在骨架碎片中,MRM过渡设为母离子→骨架碎片时,标记始终被追踪,定量准确[3][4]。
但如果内标标记在甘氨酸侧链上(如glycine-1-¹³C标记的甘氨胆酸),碎裂时标记可能随甘氨酸部分一起作为中性丢失跑掉——产物离子(骨架碎片)的质量数和未标记物完全一样,MRM过渡根本区分不了内标和目标物。
这个机制在学术文献中有明确支撑。早期胆汁酸定量研究使用氘代标记在C-2、C-4位的胆酸作为内标(如[²H₄]胆酸),碎裂后标记保留在类固醇骨架碎片中,MRM追踪有效[5][6]。1976年合成的鹅去氧胆酸-11,12-d2,标记同样在骨架上,生物稳定性验证通过——³H/¹⁴C比值在胆汁中数日不变[7],这意味着标记原子在体内代谢过程中没有发生交换或脱落,标记"钉"在骨架上不动。
胆酸-d4(CAS: 116380-66-6)的标记位点已确认为类固醇骨架C-2,2,4,4位[3]。这是骨架标记——碎裂后无论产生哪种骨架碎片,标记都留在碎片中,MRM离子对有效。
同时市面上存在胆酸-d5(CAS: 53007-09-3,5个氘标记在骨架上,部分供应商标注为甘氨胆酸-d5,建议以COA为准)和胆酸-¹³C(CAS: 52886-36-9,¹³C标记在骨架碳位)两种替代版本,标记同样在骨架上,MRM追踪均有效。三者的差异不在"标记位点"(都在骨架上),而在"标记类型"和"标记数量"——这涉及后文第二章和第三章的选型维度。
酰基肉碱的碎裂行为和胆汁酸不同,但"标记位点决定MRM有效性"的逻辑同样适用。
酰基肉碱在ESI正离子模式下,母离子[M+H]⁺碎裂产生一个特征产物离子m/z 85(肉碱母核碎片,C₅H₉O₂⁺)。不同链长的酰基肉碱——从乙酰基肉碱(C2)到十八酰基肉碱(C18)——共享同一个产物离子m/z 85。因此MRM过渡统一为:母离子(不同m/z)→ 85。
这个碎裂特征带来一个直接的推论:
标记在肉碱母核上(如d3标记在氨基侧链):碎裂后标记出现在产物离子m/z 85中(变为m/z 88),MRM追踪有效。而且d3标记在氨基侧链,远离酯键活性位点,标记不易因酯键水解而脱落[8]。
标记在酰基链上(如d9标记在酰基链全部甲基位点):碎裂后标记可能随酰基链部分作为中性丢失丢失,产物离子m/z 85不含标记——MRM过渡需要特别设计,可能要改监测母离子质量偏移而不依赖产物离子。
这就是为什么冰合试剂同位素系列同时提供异戊酰基-L-肉碱-d3(标记在氨基侧链)和异戊酰基-L-肉碱-d9(CAS: 1334532-23-8,标记在酰基链甲基)两个版本[9][10]——不是产品线冗余,是两种标记策略服务于不同的MRM方法设计。如果你用常规MRM(母离子→m/z 85),选d3版本,标记在产物离子里,直接有效;如果你需要最大质量偏移来避开低浓度干扰,选d9版本,但MRM方法要重新设计——不能直接套用d3的离子对。
选型口诀:先问标记在不在你监测的碎片里。 骨架标记最保险——无论碎裂路径怎么走,标记都跟着骨架碎片走。侧链标记需要逐一验证产物离子是否含标记,不能想当然。
同位素内标的基本原理是用质量数差异区分内标和目标物信号。四级杆质谱仪的分辨率有限——单位分辨率下,相邻质量数的离子可能存在交叉干扰。标记数量太少,内标和目标物的质谱峰可能无法完全分峰。
具体说,目标物的同位素分布(主要是¹³C的自然丰度,约1.1%)会在母离子质量数+1、+2、+3处产生同位素峰(M+1、M+2、M+3峰)。如果内标只标了2个氘(d2),母离子质量偏移只有+2 Da,内标的单同位素峰可能落在目标物的M+2同位素峰上——两个峰叠加,四级杆无法区分。
d2标记的交叉干扰风险:假设你的目标物分子量是400,内标是d2(分子量402)。目标物的M+2同位素峰(来自¹³C自然丰度)恰好出现在m/z 402——和你的内标信号叠在一起了。四级杆分不清这个m/z 402里,多少来自目标物的同位素峰、多少来自内标。分析物/内标峰面积比不再纯粹反映浓度比。
d3是最小实用标记数。+3 Da的质量偏移足以让内标单同位素峰脱离目标物M+3同位素峰的主要干扰区间。这也是为什么主流供应商(赛可锐、MCE等)的酰基肉碱内标产品线中,最小标记规格通常为d3而不是d2——主要原因是质谱分辨率对分峰的要求,d2的+2 Da偏移可能不足以脱离目标物同位素峰的干扰区间。
标记数量上去后,分峰没问题了,但新的问题来了——标记越多,离子响应可能越弱。
酰基肉碱内标存在d3和d9两种标记策略的分化,两者不只是"标3个还是标9个"的数量差异,标记位点、适用场景、成本都不同[8][9][10][11]:
离子响应差异的来源:多氘标记(d9)在分子中引入9个C-D键,C-D键的极化率低于C-H键,可能微小影响ESI电离效率。虽然单个C-D键的影响极小,但9个叠加后,离子化效率的降低在某些化合物上可被观测到——具体影响程度因化合物结构和离子化机制而异。d3只引入3个C-D键,影响更小,离子响应相对更高。
信噪比差异的来源:d9的+9 Da质量偏移让内标信号远离目标物的同位素峰包络,在低浓度区间,背景噪声和同量异位素干扰更少,信噪比更高。d3的+3 Da偏移在中等浓度下够用,但在极低浓度(如新生儿筛查干血斑中痕量酰基肉碱)时,可能受到邻近质量通道的残余干扰。
选型逻辑:不是"d9一定比d3好",而是看你测的样本浓度区间。中高丰度样本(如血清胆汁酸定量、常规酰基肉碱筛查),d3的离子响应优势更实际;极低丰度样本(如干血斑痕量代谢物、微体积临床样本),d9的信噪比优势更关键。
赛可锐同时提供异戊酰基-L-肉碱-d3(标记在氨基侧链)和异戊酰基(d9)-L-肉碱(CAS: 1334532-23-8,标记在酰基链甲基)两个版本[9][10],这不是产品线冗余——两个版本的标记位点不同,服务于不同的MRM方法设计:
d3版本标记在氨基侧链:碎裂后标记留在m/z 85产物离子中(变为m/z 88),MRM追踪直接有效,适合常规筛查。
d9版本标记在酰基链甲基:碎裂后标记可能随酰基链丢失,MRM方法需要特别设计(如监测母离子质量偏移而非依赖产物离子),但+9 Da偏移在极低浓度下信噪比更优。
两个版本的共存说明一个事实:标记数量和标记位点不能分开选。d9标在酰基链上和d9标在母核上,效果完全不同。选型时要同时确认两个维度——标多少和标在哪。判断标准很简单:你用常规MRM(母离子→m/z 85)就选d3;你需要最大质量偏移且愿意重新设计MRM方法就选d9。
胆汁酸内标的标记数量选择逻辑和酰基肉碱一致,但品类特点略有不同:
胆汁酸分子量较大(胆酸MW 408.6),+4 Da(d4)的质量偏移相对于分子量的比例较小,但胆汁酸的MRM通常监测骨架碎片(分子量约200-300),+4 Da在碎片层面的相对偏移相当于1.3%-2%——远大于四级杆单位分辨率的交叉干扰区间,分峰没有问题。因此胆汁酸内标d4是主流规格,d5作为替代,差异主要在标记数量带来的同位素效应程度上(第三章展开)。
选型口诀:先问浓度区间够不够分峰→再问离子响应够不够用。 d3是分峰底线,d9是信噪比上限。中高丰度选d3,极低丰度选d9。但无论选d3还是d9,都要同时确认标记位点在不在产物离子里——这是第一章的逻辑,不能因为标记数量够了就忽略位点。
前两章讲的都是质谱层面的问题——标记位点决定MRM追踪有效性,标记数量决定分峰能力。但还有一个色谱层面的问题,很多人没意识到:氘代内标和目标物在反相色谱上的保留时间可能不一样。
这个差异很小——通常只有几秒,折算成保留时间偏移不到1%。在简单基质(如标准品溶液)中几乎无影响。但在复杂基质(如血清、干血斑提取液)中,色谱峰最宽处可能只有10-15秒,几秒的偏移意味着内标和目标物在色谱峰的不同位置经历不同程度的离子抑制——分析物/内标峰面积比不再恒定,定量准确性受影响。
这就是氘代同位素效应(deuterium isotope effect)。
同位素效应的物理化学基础很直接:C-D键的键长比C-H键略短,键能更高。这意味着氘代分子的C-D键极化率低于C-H键,分子的整体疏水性微小降低。
打个比方,C-D键比C-H键"更紧"——就像一件衣服的拉链换成了更紧的扣子,整体轮廓微微收了一点,挂在衣架上的位置就稍微偏了。在反相色谱(RPC)中,保留时间取决于分子与固定相(C18烷基链)的疏水相互作用。疏水性降低→与固定相作用力减弱→保留时间略微提前。多氘标记(如d9,引入9个C-D键)的效应比少氘(如d3,3个C-D键)更明显。
¹³C标记则几乎没有这个问题。¹³C与¹²C的化学性质差异极小——¹³C与¹²C的键长差异比氘代小约一个数量级。¹³C标记分子的色谱保留时间和未标记物几乎完全一致,内标和目标物严格共流出,经历相同的基质效应。
这一现象不是理论推演,已有明确的实验证据:
Wang等人(2007) 系统证明:氘代内标与目标物在反相色谱上存在微小保留时间差异,导致两者经历不同程度的基质离子抑制,分析物/内标峰面积比不再恒定,定量准确性受影响(PMID: 16959461)[12]。这篇文献是氘代同位素效应领域被引用广泛的证据之一。
氚同位素效应研究:多氚(³H)标记的类二十烷酸在反相HPLC上保留时间提前3-7%,取决于氚取代的数量和位置[13]。虽然氚的效应比氘更大(³H与H的质量差异比D与H更大),但规律一致——同位素标记数量越多,保留时间偏移越大。
维生素K₁研究:氘代维生素K₁内标与目标物在不同保留时间经历不同基质效应,可能导致偏差测量(PMID: 27979265)[14]。这证明同位素效应不只存在于胆汁酸/酰基肉碱体系,在脂溶性维生素等其他LC-MS/MS定量领域同样存在。
氘代同位素效应的存在不意味着氘代内标不能用——事实上,氘代内标至今仍是胆汁酸和酰基肉碱LC-MS/MS定量的主流选择,原因很简单:品类全、价格友好、合成路线成熟。从1970-80年代GC-MS时代的[²H₄]胆酸[15],到现代LC-ESI-MS/MS的d4/d5规格[16][17],氘代内标的使用历史超过四十年。
但使用氘代内标时,有几个实操要点需要注意:
第一,验证共流出。方法开发阶段,在流动相中掺入等量内标和目标物,检查保留时间是否完全重叠。如果偏移可观测,评估基质效应区域是否覆盖该保留时间窗口——如果基质效应平坦区域足够宽,几秒偏移的影响可以忽略。
第二,d9比d4更需要验证。标记数量越多,同位素效应越明显。d9内标的保留时间偏移可能比d4更大,在方法开发时需要更仔细地评估共流出程度。
第三,复杂基质比简单基质更敏感。血清、组织匀浆、干血斑提取液等复杂基质中离子抑制区域多且窄,几秒偏移就可能落入不同的基质效应区间。标准品溶液中几乎没有基质效应,同位素效应的影响可以忽略。
¹³C标记内标的优势在于"省心"——不需要验证共流出,内标和目标物严格共流出,基质效应校正最准确。但代价是价格显著更高,且品类有限。以胆酸为例,胆酸-¹³C(CAS: 52886-36-9)与胆酸-d4(CAS: 116380-66-6)在市面上同时存在[3][18],但¹³C版本的价格通常显著高于氘代版本,且不是所有胆汁酸/酰基肉碱品类都有¹³C标记版本可选。
选型口诀:先问基质复不复杂→再问预算够不够。 简单基质+常规精度→氘代够用,验证共流出即可。复杂基质+高精度需求→优先考虑¹³C,如果品类和预算允许。但无论选哪种,标记位点必须在产物离子里——这是第一章的底线,标记类型的选择不能突破这个底线。
注:牛磺胆酸-d8标记在骨架+侧链,碎裂时侧链标记可能随中性丢失丢失,MRM方法需验证产物离子是否含标记。
注:酰基肉碱共享产物离子m/z 85(肉碱母核碎片)。标记在氨基侧链的d3版本,碎裂后标记留在产物离子中(m/z 88),MRM追踪有效。标记在酰基链的d9版本,碎裂后标记可能随酰基链丢失,需验证或改监测母离子质量偏移。
路径一:临床常规定量(血清胆汁酸谱/酰基肉碱筛查)
样本特点:基质中等复杂(血清),分析物浓度中高丰度
推荐标记:氘代d4(胆汁酸)/ d3(酰基肉碱),骨架标记或氨基侧链标记
选型理由:浓度区间不需要d9的最大质量偏移;基质复杂度中等,氘代同位素效应的保留时间偏移在可接受范围,方法开发时验证共流出即可;氘代品类全、价格友好
代表产品:胆酸-d4(CAS: 116380-66-6)、甘氨胆酸-d4、异戊酰基-L-肉碱-d3
注意事项:方法开发阶段务必在流动相中验证内标与目标物共流出程度
路径二:新生儿筛查(干血斑痕量代谢物)
样本特点:基质复杂(干血斑提取液),分析物浓度极低,微量样本
推荐标记:酰基肉碱d9(极低丰度组分)或d3(中高丰度组分),根据具体分析物浓度选择
选型理由:干血斑中酰基肉碱含量低,d9的+9 Da质量偏移远离同量异位素干扰,信噪比更优;但浓度较高的组分(如C0游离肉碱、C2乙酰基肉碱)d3离子响应更强,不需要d9
代表产品:乙酰基-L-肉碱-d9(CAS: 203805-90-7)、丙酰基-L-肉碱-d3(CAS: 1334532-19-2)
注意事项:新生儿筛查通常使用Chromsystems等商业试剂盒提供的全套同位素内标混合液[19][20],内标已按浓度区间配好,自建方法需逐一评估
路径三:药物代谢与药效研究(胆汁酸代谢追踪)
样本特点:基质复杂(组织匀浆/胆汁),需要高精度定量,追踪代谢转化路径
推荐标记:优先¹³C标记(如胆酸-¹³C,CAS: 52886-36-9),如果品类和预算允许;其次d4/d5骨架标记
选型理由:药物代谢研究对定量精度要求高,¹³C标记无同位素效应,内标与目标物严格共流出,基质效应校正最准确;如果¹³C版本不可用或预算有限,d4骨架标记+共流出验证是可行的替代方案
代表产品:胆酸-¹³C(CAS: 52886-36-9)、奥贝胆酸-d4
注意事项:¹³C品类有限,不是所有胆汁酸都有¹³C版本,选型前确认供货情况
▸ 混合内标液和单标怎么选?
商业试剂盒(如Chromsystems)提供全套同位素内标混合液,按各分析物的典型浓度区间预配,适合新生儿筛查等需要同时检测数十种分析物的场景[19][20]。自建方法如果只检测少数几种胆汁酸或酰基肉碱,单标更灵活,可以按实际浓度范围调整内标用量。混合内标液的优点是省去了逐一配制的工作量和不同内标之间可能的交叉干扰验证;缺点是不够灵活,某一种内标浓度不匹配时无法单独调整。
▸ 氘代内标的储备液怎么保存?
一般而言,氘代胆汁酸内标储备液建议-20℃避光保存,避免反复冻融。酰基肉碱内标(尤其是含酯键的酰基肉碱)需注意酯键在极端pH或高温条件下可能水解——虽然d3标记在氨基侧链时标记本身不易因水解脱落,但水解会导致酰基肉碱降解为游离肉碱和相应脂肪酸,内标失去原有质量数特征。建议配制成工作液后短期使用,不宜长期存放于4℃。
▸ 怎么判断一款内标的标记位点在不在产物离子里?
最直接的方法是查阅内标的结构式和标记位点信息(产品COA或供应商技术资料),确认标记位点位于哪个结构区域。然后查阅目标化合物的CID碎裂文献,确认你监测的产物离子对应哪个结构碎片。如果标记位点在产物离子对应的碎片结构内,MRM追踪有效;如果标记位点在中性丢失部分,需要改设产物离子或改用骨架标记版本。胆汁酸的碎裂文献相对充分[2],酰基肉碱的m/z 85产物离子机制也有明确报道。
▸ d3和d9同时存在于同一化合物的不同版本,怎么选?
一般而言,先评估你的样本中该分析物的浓度区间。如果浓度在中高范围(如血清胆汁酸、常规酰基肉碱筛查),d3的离子响应优势更实际,同位素效应也较小。如果浓度在极低范围(如干血斑痕量代谢物、微体积临床样本),d9的质量偏移优势更关键。如果不确定浓度区间,可以先做预实验,用d3版本试测——如果信噪比不够再换d9。同时要确认d3和d9版本的标记位点不同(如异戊酰基-L-肉碱d3标在氨基侧链、d9标在酰基链),MRM方法设计可能不同。
▸ ¹³C标记内标一定比氘代好吗?
不一定。¹³C标记的优势是无同位素效应、内标与目标物严格共流出,在复杂基质和高精度需求场景下校正更准确。但¹³C标记的劣势同样明显:价格显著更高、品类有限(不是所有胆汁酸和酰基肉碱都有¹³C版本)、标记位点选择少。对于常规筛查和中高丰度样本,氘代内标经过共流出验证后完全可以满足精度要求。选型不是"越贵越好",而是匹配检测场景的实际需求。
参考文献
[1] 中国新生儿酰基肉碱室间质评 — PubMed (PMID: 31232035)
[2] 串联质谱胆汁酸碎裂路径研究 — ScienceDirect (doi:10.1016/j.steroids.2011.11.008)
[3] 胆酸-2,2,4,4-d4 — Qeios/NCI (doi:10.32388/6vld5j)
[4] 胆酸-d4 — MCE (CAS: 116380-66-6)
[5] 3β-羟基-5-胆烯酸氘代内标GC-MS定量 — PubMed (PMID: 6537044)
[6] 非硫酸化胆汁酸血清定量质谱碎片法 — PubMed (PMID: 7287668)
[7] 鹅去氧胆酸-11,12-d2合成与验证 — PubMed (PMID: 932557)
[8] 渝偲医药异戊酰基-L-肉碱-d3科普 — ChemicalBook
[9] 丙酰基-L-肉碱-d3 — 赛可锐/盖德化工 (CAS: 1334532-19-2)
[10] 异戊酰基(d9)-L-肉碱 — 赛可锐/盖德化工 (CAS: 1334532-23-8)
[11] 乙酰基-L-肉碱-d9 — MCE (CAS: 203805-90-7)
[12] 氘代内标基质效应研究 — PubMed (PMID: 16959461, doi:10.1016/j.jpba.2006.08.010)
[13] 氚同位素效应对HPLC保留时间影响 — ScienceDirect (doi:10.1016/0952-3278(94)90243-7)
[14] 维生素K₁氘代内标同位素效应 — PubMed (PMID: 27979265)
[15] 氚/氘代胆汁酸合成改进 — ResearchGate
[16] 胆汁酸LC-ESI-MS/MS快速分析方法 — Springer (doi:10.1007/s00216-016-0048-1)
[17] 胆汁酸LC-QTOF-MS定量方法 — PubMed (PMID: 26143062)
[18] 胆酸-¹³C — MCE (CAS: 52886-36-9)
[19] LC-MS/MS新生儿筛查进展 — ScienceDirect
[20] 新生儿筛查试剂盒LC-MS/MS — Chem17
本文为冰合试剂(单体(重庆)生物科技有限公司)发布的科研资讯内容,旨在为从事LC-MS/MS定量分析的研究人员提供同位素内标选型参考。文中涉及的产品信息基于公开文献和供应商公开资料整理,具体产品规格请以实际COA为准。冰合试剂为单体(重庆)生物科技有限公司注册商标。
邮箱 danticq@163.com
电话 023-68279488 | 19923948071 | 19112026971
地址 重庆市江北区盘溪路422号3幢
加关注
Copyright 2025 冰合试剂 All Rights Reserved.
渝ICP备2023007920号-3
 渝公网安备 50010502504579号
 磷脂系列